疲労とは、生体防御のシグナル
長時間のデスクワークを終えた後にジムへ向かうと、普段なら軽々と持ち上げられる重量が重く感じられたり、数キロのジョギングが苦痛に思えたりした経験は誰にでもあるはずです。あるいは、熱心に運動をこなした日の午後は、重要な書類のチェックでミスが頻発し、集中力が続かなくなるといった現象もあったりします。
私たちはこうした現象を「疲れて気合が入らないからだ」と精神論で片付けがちですが、身体の内部ではきわめて精緻で複雑な心理生理学的プロセスが進行しています。疲労は単なる筋肉のエネルギー切れでも、根性の欠如でもありません。それは生命の恒常性を守り、破滅的な破綻を回避するために脳と末梢組織が高度に協調した結果生じる、生体防御のシグナルなのです。
しかし、従来の科学研究において、疲労という概念は運動生理学、心理学、神経科学、臨床医学といった各専門領域でばらばらに定義されてきました。生理学者が筋肉の収縮力低下のみを疲労と呼ぶ一方で、心理学者は主観的な倦怠感や気力の減退を疲労と呼び、両者の対話は長年にわたり噛み合っていませんでした。この学術的な断絶を解消し、心身の相互作用を一つの統合された枠組みとして再定義したのが、本総説が提示する最新の疲労モデルです。
本研究の新規性と新たな疲労フレームワーク
特性疲労・状態疲労/パフォーマンス疲労・自覚的疲労(2016年)
かつてEnokaとDuchateau(2016年)は、疲労を長期的な特性疲労(trait fatigue)と、課題遂行によって一時的に引き起こされる状態疲労(state fatigue)に大別し、状態疲労を客観的な指標の低下である「パフォーマンス疲労(performance fatigability)」と主観的な知覚変化である「自覚的疲労(perceived fatigability)」の2軸で捉える枠組みを提案しました。
特性疲労(trait fatigue)
・パフォーマンス疲労(performance fatigability)
・自覚的疲労(perceived fatigability)
状態疲労(state fatigue)
・パフォーマンス疲労(performance fatigability)
・自覚的疲労(perceived fatigability)
このモデルは運動生理学界に大きな影響を与えましたが、いくつかの決定的な要素が抜け落ちていました。それは、認知機能の低下に関する体系的な統合が不十分であったこと、そして努力の知覚(effort perception)、感情価(affective valence)、自己調整機能(self-regulation)、時間知覚といった心理生理学的変数が明示的に組み込まれていなかった点です。
運動パフォーマンス疲労・自覚的運動疲労/認知パフォーマンス疲労・自覚的認知疲労
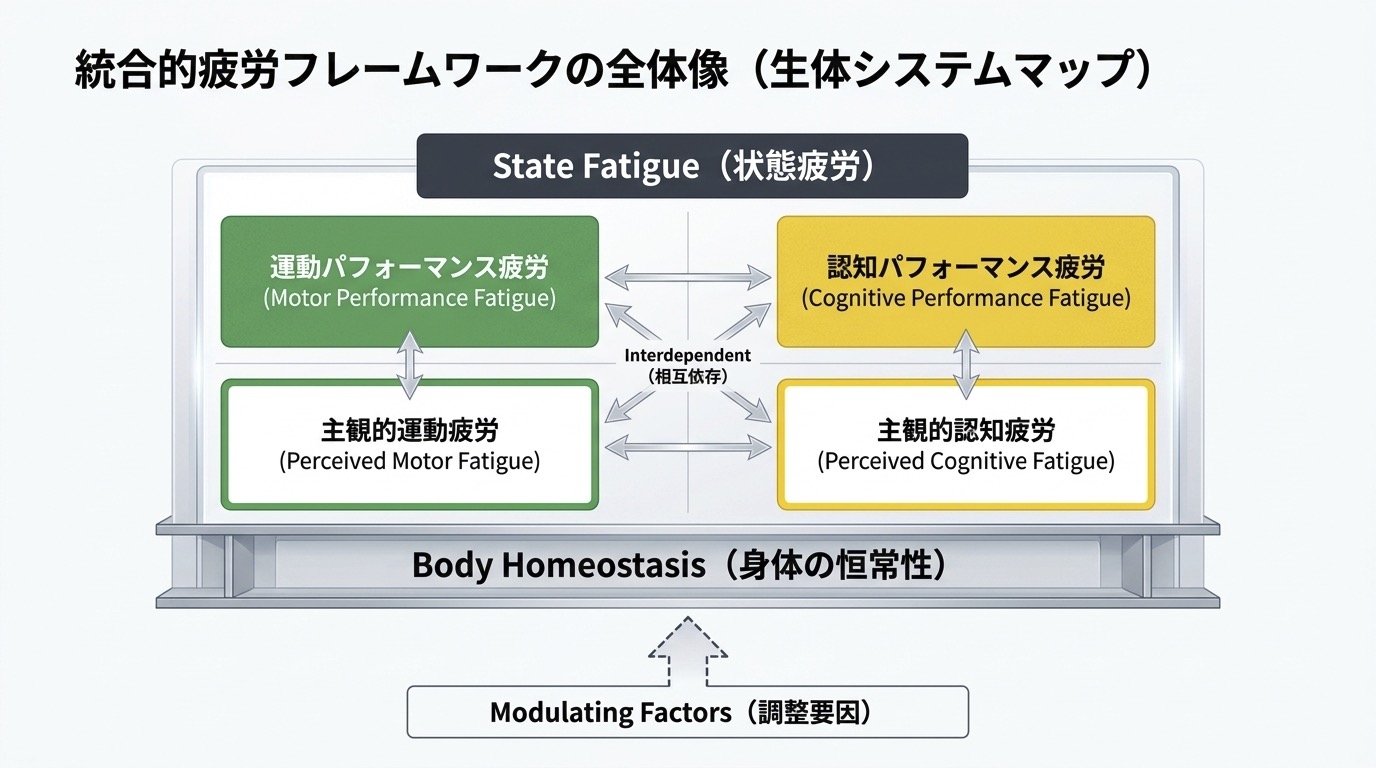
Behrensらの研究チームは、この先行モデルを大幅に刷新しました。彼らは状態疲労を「運動または認知課題によって引き起こされる、運動・認知パフォーマンスの低下、および/または疲労知覚の亢進を特徴とする心理生理学的状態」と再定義しました。
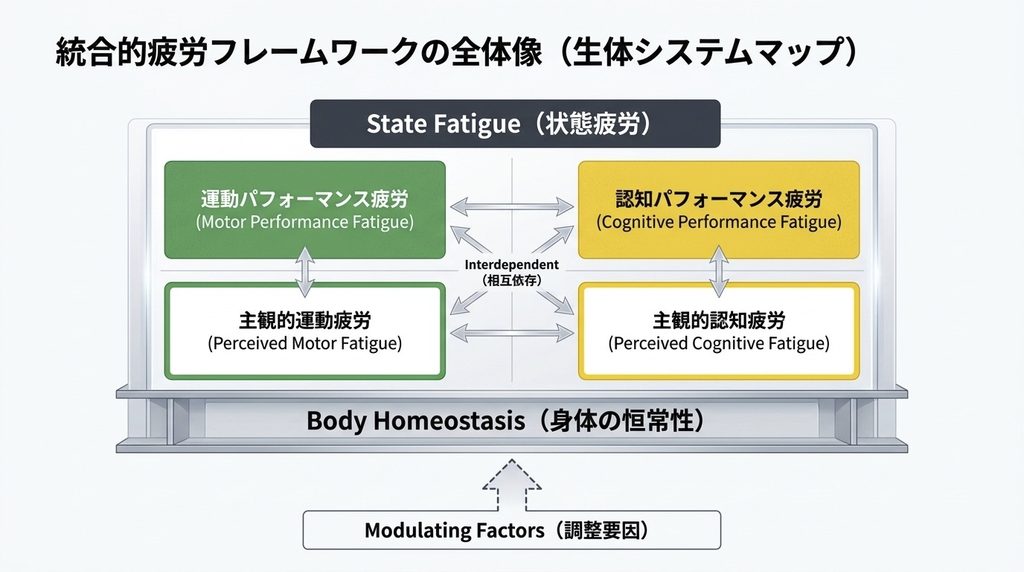
このモデルの革新性は、疲労を単一の原因に帰するのではなく、運動パフォーマンス疲労、自覚的運動疲労、認知パフォーマンス疲労、自覚的認知疲労という4つの下位領域が、互いに双方向かつ動的に影響し合っていると捉えた点にあります。
状態疲労(state fatigue)
・運動パフォーマンス疲労
・自覚的運動疲労
・認知パフォーマンス疲労
・自覚的認知疲労
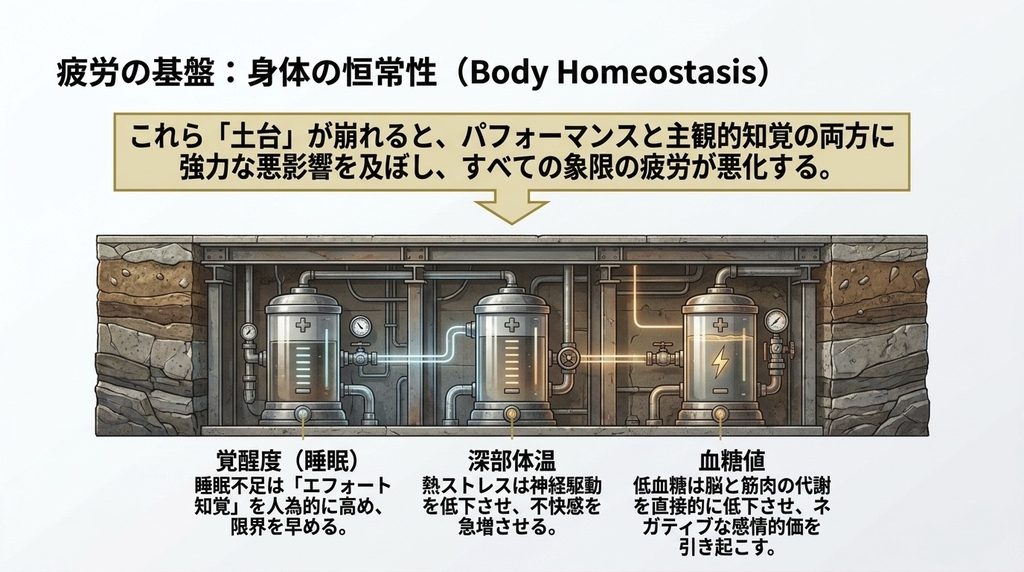
さらに、これらすべての根底には、覚醒度、深部体温、血糖値、水分補給状態、酸素飽和度、神経伝達物質などの生体恒常性(ボディ・ホメオスタシス)が存在し、年齢や性別、基礎疾患、課題の負荷特性といった修飾因子によって各要因の相対的な重要性が絶えず変化することを明らかにしました。
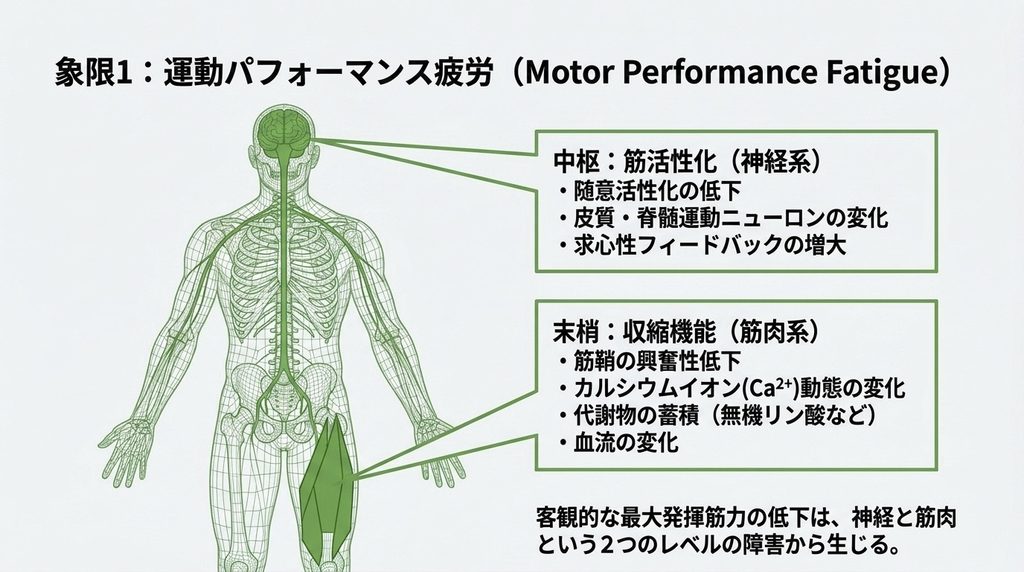
運動パフォーマンス疲労:筋肉が動かなくなるメカニズム
運動パフォーマンス疲労は、最大随意筋力の低下として定量化されます。この低下は、中枢性の「筋活動(神経系)」と末梢性の「筋収縮機能(筋組織自体)」の2つの水準で進行します。
末梢筋組織
筋収縮機能の現場である筋線維レベルでは、激しい運動に伴い代謝産物が急激に蓄積します。かつて疲労の主犯と目されていた乳酸や水素イオンによるアシドーシスは、近年の生理学では筋力低下の主要因ではないことが示されています。
現在の分子生物学的知見において、収縮不全の最も主要な直接的要因は無機リン酸の蓄積です。無機リン酸は筋小胞体からのカルシウムイオン(Ca2+)放出を阻害し、筋原線維のCa2+感受性を低下させ、さらにはアクチンとミオシンのクロスブリッジにおける力発生プロセスそのものを直接的に減弱させます。また、運動後に長引く持続的な筋力低下には、活性酸素種(ROS)による筋タンパク質の修飾や興奮収縮連関の障害が深く関与しています。
中枢神経系筋活動低下
一方、中枢神経系における筋活動の低下、すなわち随意活性化の減衰も見逃せません。大脳皮質運動野の興奮性低下や脊髄α運動ニューロンの発火頻度減少が起こると、筋組織に十分な指令が届かなくなります。これには、活動筋の機械的・化学的変化を感知するIII群およびIV群求心性神経線維からの求心性シグナルが重要な役割を果たしています。筋肉内の代謝産物蓄積によってこれらの知覚神経が強く刺激されると、中枢神経系に対して強力な抑制性フィードバックがかかり、中枢からの運動出力が強制的に引き下げられるのです。
運動様式
運動の様式によっても、このメカニズムの比率は劇的に変化します。短時間の高強度運動では筋収縮機能(末梢)の低下が支配的ですが、長時間の低強度運動では筋活動(中枢)の随意活性化低下が主因となります。また、求心性(コンセントリック)収縮は代謝産物の蓄積が著しく初期の筋力低下が大きい反面、遠心性(エキセントリック)収縮では微細な筋損傷が生じ、長期にわたる筋力および随意活性化の低下を招きます。
活動筋量
活動筋の量も重要であり、活動筋量が大きい全身運動ほど、III群・IV群求心性線維を介した中枢への抑制シグナルが増大し、末梢の限界を迎える前に中枢性の随意活性化低下が顕著に現れます。
加齢や性別
加齢や性別による差異も興味深い点です。高齢者はタイプII筋線維の萎縮により解糖系代謝への依存度が低く、低強度の等尺性収縮では若年者よりも疲労しにくいという特徴を示します。しかし、収縮速度の低下や高閾値運動単位の脱落があるため、高速の短縮性収縮では若年者よりも著しい筋力低下を示します。また、女性はタイプI筋線維の割合が高く、毛細血管密度やミトコンドリアの呼吸能力に優れ、筋血流が良好に保たれるため、等尺性運動では男性よりも疲労抵抗性を示します。しかし、この性差も高速運動になると消失します。
主観的運動疲労
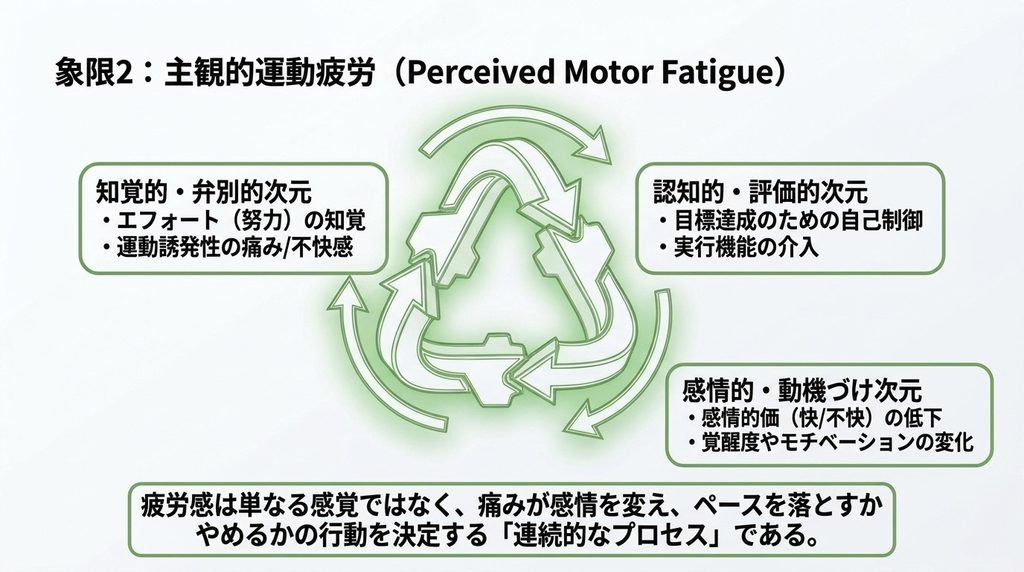
運動中に「もう限界だ」と感じる自覚的運動疲労は、単に筋肉の痛みを感じているだけではありません。Venhorstらの動的システム枠組みを応用すると、この感覚は以下の3つの次元の相互作用として理解できます。
知覚・弁別次元(Perceptual-Discriminatory Dimension )
第1は「知覚・弁別次元(perceptual-discriminatory dimension )」です。ここには努力の知覚や運動誘発性の筋疼痛が含まれます。努力知覚は、脳から筋肉へ送られる運動指令のコピーである遠心性コピー(corollary discharge)を脳内の感覚領域が処理することによって主に生み出されます。運動によって筋収縮機能が低下すると、同じ出力を維持するためにより大きな運動指令を皮質から送らなければならず、結果として努力知覚が跳ね上がります。
感情・動機づけ次元(Affective-Motivational Dimension)
第2は「感情・動機づけ次元(Affective-Motivational Dimension)」です。これには感情価(快・不快の度合い)、覚醒度、動機づけが含まれます。筋肉や内臓の受容器からの求心性情報は、前帯状皮質や前部島皮質に投射され、無意識の生体情報が「不快感」という意識的な感情として統合されます。例えば、有酸素性代謝から無酸素性代謝への移行や筋グリコーゲンの枯渇は、感情価を急激に「不快」へと傾かせます。この不快感の低下速度は、運動の疲労困憊に至る時間と強く相関することが示されています。
認知・評価次元(Cognitive-Evaluative Dimension)
第3は「認知・評価次元(Cognitive-Evaluative Dimension)」です。ここでは自己調整、自己制御、実行機能が働きます。高まる努力知覚や痛み、不快な感情に抗いながら、課題を継続するか、ペースを落とすか、あるいは運動を完全に中止するかを判断するプロセスです。自己制御には背外側前頭前野を中心とする実行機能ネットワークが動員されますが、これには多大な認知的資源を消費します。
認知パフォーマンス疲労
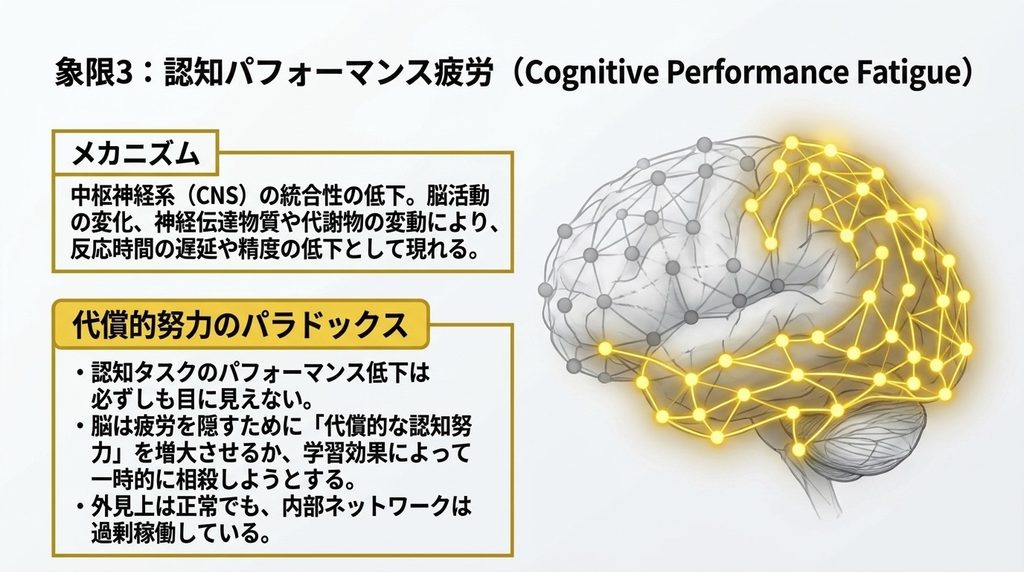
長時間の知的作業に伴う認知的疲労も、客観的な「認知パフォーマンス疲労」と主観的な「自覚的認知疲労」に分かれます。
認知課題を長時間続けると、反応時間の遅延やエラー率の増加、反応のばらつき(試行間変動)の増大が生じます。神経画像研究では、持続的な認知作業に伴い、背外側前頭前野、前帯状皮質、島皮質の活動変化が確認されています。
興味深いことに、長時間の認知課題を行っても、客観的なパフォーマンス低下が観察されないケースが多々あります。これは課題への慣れによる学習効果や、パフォーマンスを維持しようと脳が一時的に代償的な努力を注ぎ込むために生じる現象です。しかし、客観的パフォーマンスが保たれていても、被験者の自覚的認知疲労は時間とともに確実に増大していきます。
自覚的認知疲労
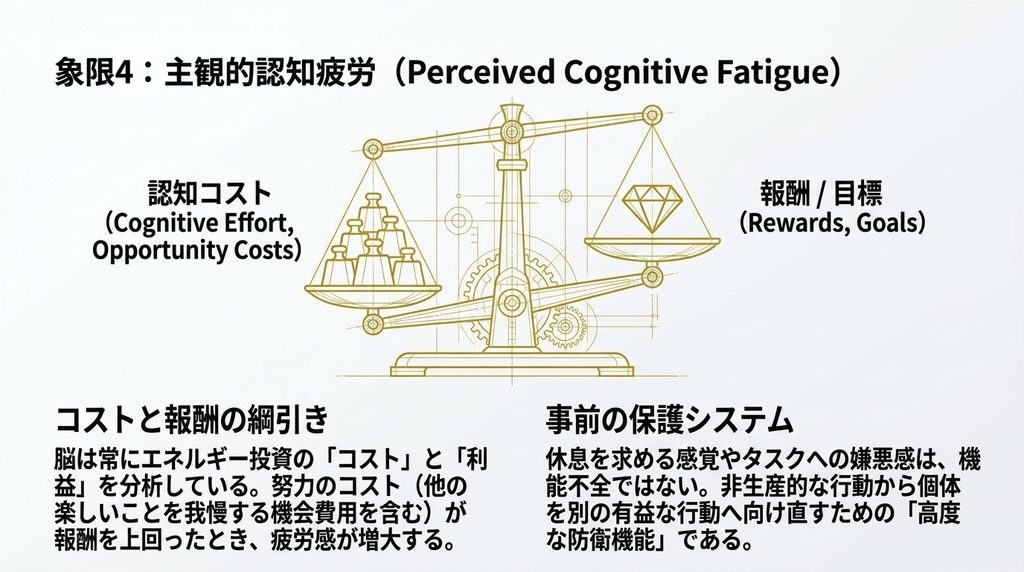
自覚的認知疲労の発生メカニズムとして有力なのが、認知的努力のコスト・ベネフィットモデルです。人間にとって認知制御を発揮することは本質的にコスト(負担)であり、嫌悪感を伴うプロセスです。これには課題そのものに注ぐ内的な制御コストだけでなく、他のより魅力的で報酬の高い活動(休息する、娯楽を楽しむなど)を諦めることによって生じる「機会費用(opportunity cost)」の蓄積が含まれます。作業時間が延びるにつれ、注ぎ込む努力のコストが将来得られる報酬の価値を上回ったとき、脳は作業への動機づけを低下させ、活動を停止または別行動へ切り替えさせるためのストッパーとして自覚的疲労感を増大させます。
また、認知疲労は生体防御アラートとしても機能します。過度な認知的酷使による将来的な機能破綻を回避するため、身体が先制攻撃的にブレーキをかけているのです。この疲労感は、退屈や興味の喪失、コントロール感の欠如によってさらに増幅されます。数字をただ眺め続けるような受動的で退屈な作業は、計算課題よりも急速に感情価を低下させ、強い主観的疲労を生じさせることが確認されています。
心と身体のクロスオーバー:認知と運動の相互干渉
この論文で最も実践的かつ衝撃的な示唆を与えてくれるのが、認知系と運動系の間に存在する明確なクロストーク(相互作用)です。
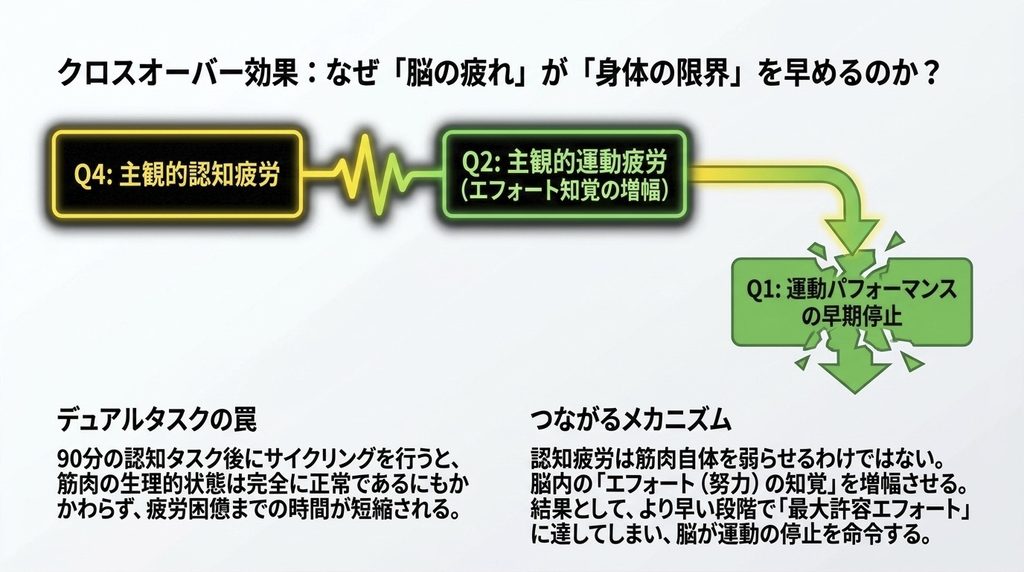
代表的な実験例として、Marcoraら(2009年)の研究が挙げられます。健康な被験者に90分間の持続的な反応抑制課題(ストループ課題などの認知的負荷)を行わせた後、最大出力の80%という高強度で疲労困憊に至るまで自転車を漕いでもらいました。その結果、心拍数、血中乳酸値、酸素摂取量といった心肺代謝指標は対照群(ドキュメンタリー映画を視聴した群)と全く同じであったにもかかわらず、認知課題を行った群では運動耐用時間が劇的に短縮しました。この原因は、運動中の努力知覚が最初から異常に高く推移し、耐えうる努力の限界点に通常よりもはるかに早く到達してしまったためでした。
逆に、換気性作業閾値の90%という負荷で60分間の自転車運動を行わせた後に認知テストを受けさせると、視覚作業記憶の反応時間が顕著に遅延することも報告されています。さらに、筋力トレーニングや持久性運動中に暗算や記憶課題を同時に課す「運動・認知二重課題」を行うと、運動単独時に比べて疲労困憊までの時間が短縮し、大腿四頭筋の随意活性化の低下が促進され、心拍数や瞳孔径の拡大とともに運動努力知覚が増大することが実証されています。
なぜ、筋肉を使っていない認知作業が筋持久力を奪い、運動が認知機能を損なうのでしょうか。その神経学的基盤は、前頭前野や前帯状皮質といった共通の脳領域にあります。運動中の不快感に耐えてペースを維持する「自己調整」と、複雑な認知的作業を処理する「認知制御」は、脳内の同一リソースを取り合っているのです。一方が疲弊すれば、もう一方の機能もドミノ倒しのように制限されます。
疲労の基盤:身体の恒常性(Body Homeostasis)
身体の恒常性は運動・認知の客観的低下および自覚的疲労のすべてを根底で制御する共通基盤として位置づけられています。
- 深部体温(Core temperature)
体温上昇や熱ストレスは、筋活動の中枢性抑制を招くとともに努力知覚(effort perception)を高め、認知課題時の脳血流変化や自覚的認知疲労の増大をもたらします。 - 水分状態(Hydration)
急性の脱水は、神経筋機能そのものに異常がなくても努力知覚を押し上げ、持久性パフォーマンスを低下させます。 - 血糖とグリコーゲン(Blood glucose)
低血糖は中枢性の疲労と努力知覚の上昇を招きます。また、筋グリコーゲンの枯渇は運動中の感情価(快・不快)を急速に不快へと傾かせ、疲労困憊に至る時間を早めます。 - 酸素化(Oxygenation)
急性かつ重度の低酸素は、末梢筋の代謝変化と脊髄上位の中枢性疲労を加速させ、努力知覚を高めて運動耐用能を低下させます。 - 覚醒度と睡眠(Wakefulness)
睡眠剥奪は運動耐用時間を短縮させ、認知課題における努力の配分を歪めて主観的疲労・負担感を増大させます。 - 神経伝達物質と代謝状態(Neurotransmitter / Metabolic state)
代謝産物の蓄積や神経伝達物質の変動は生体内部の内部環境の乱れ(恒常性の攪乱)となり、コストと報酬の計算を狂わせます。 - 栄養学的・薬理学的介入
カフェイン摂取やカフェイン・マルトデキストリンによる口腔内リンス(洗口)は努力知覚を和らげ、疲労を軽減する介入として示されています。
このように、恒常性の破綻は筋肉や神経の出力を低下させるだけでなく、不快感や過剰な努力知覚という主観的シグナルを生成し、生体を保護するために運動や認知活動を強制的に抑制する役割を果たしています。
本研究の限界(Limitation)
本総説が言及している研究上の限界として、まず認知疲労の評価において疲労誘発課題と同一の課題で効果を測定すると、学習効果や補償的努力によって機能低下が覆い隠されやすい点が挙げられます。また、実験室で用いられる無機質な認知タスクは生態学的妥当性が低く、実生活の複雑な状況を完全には再現できていません。さらに、主観的疲労、努力知覚、眠気、痛みの定義や評価尺度が研究間で統一されておらず、主観的指標と客観的パフォーマンス指標の乖離が頻繁に見られる点、そして年齢や性別による影響について報告間で多くの矛盾が存在する点も今後の課題とされています。
明日からの生活と臨床に活かせる実践的アプローチ
この多次元的な疲労フレームワークは、日々のコンディショニング、仕事の生産性向上、そして臨床現場におけるリハビリテーション戦略に極めて有益な知見を提供してくれます。
第一に、重要な身体パフォーマンスやトレーニングを行う直前には、高い集中力を要する認知的作業を避けるべきです。激しい知的労働の直後は、筋肉自体は無傷であっても脳内の努力知覚系が疲弊しており、通常よりはるかに早く「限界」を感じてしまいます。大切な試合や高強度のワークアウトを予定している場合は、直前の長時間のデスクワークやスマートフォンによる過度な情報処理を減らし、脳の認知制御リソースを温存しておくことがパフォーマンスを最大化する鍵となります。
第二に、運動中や作業中の主観的負荷を軽減するための心理的・環境的モジュレーションの活用です。努力知覚と感情価は、外的・内的刺激によって変調可能です。音楽の聴取、ポジティブなセルフトーク、細分化された中間目標の設定などは、大脳皮質における感覚信号の解釈を書き換え、努力知覚を直接的に引き下げることが示されています。カフェインの摂取もアデノシン受容体に拮抗することで努力知覚を低減させ、持久力を向上させます。また、退屈は感情価を低下させ主観的疲労を急速に悪化させるため、反復的な運動や単調なデスクワークには適度な変化や興味を惹く要素を導入することが重要です。
第三に、生体恒常性の厳密な管理です。脱水、低血糖、睡眠不足、深部体温の上昇は、筋収縮力や神経伝導を損なうだけでなく、努力知覚を押し上げ、感情価を不快へと叩き落とします。十分な水分と適度な糖質の補給、適切な室温管理、そして睡眠の確保は、単なる体調管理ではなく、中枢神経系が疲労シグナルを誤発信することを防ぐための最も強力な防壁です。
第四に、臨床やリハビリテーションにおける多面的な評価の導入です。慢性疾患や神経疾患を抱える患者において、客観的な筋力や歩行速度が維持されているからといって、疲労していないと判断してはなりません。患者が感じている自覚的疲労や努力知覚の増大は、脳内における代償作用の限界を告げるシグナルです。客観的指標と主観的尺度(努力知覚尺度や感情尺度など)を同時にモニタリングし、認知負荷と運動負荷の重複をコントロールすることが、安全で持続可能な機能回復への近道となります。
疲労を正しく理解することは、心と身体の限界を適切にコントロールすることに他なりません。脳と筋肉の声に耳を傾け、そのメカニズムを味方につけることで、私たちのパフォーマンスと生活の質は劇的な進化を遂げるはずです。
参考文献
Behrens, M., Gube, M., Chaabene, H., Prieske, O., Zenon, A., Broscheid, K. C., Schega, L., Husmann, F., and Weippert, M. (2023). Fatigue and Human Performance: An Updated Framework. Sports Medicine, 53(1), 7-31. https://doi.org/10.1007/s40279-022-01748-2