はじめに
現代社会において、長時間の労働や交代勤務、スマートフォンへの依存によって睡眠時間を削る生活はもはや珍しくありません。しかし、その代償は単なる翌朝のあくびや集中力の低下にとどまりません。私たちの脳の最前線で有害物質の侵入を防ぎ、神経組織の清浄な環境を守り続けている血液脳関門(blood-brain barrier;BBB)が、睡眠不足によって密かに変容し、やがて機能不全へ追い込まれている事実が明らかになってきました。
これまでBBBは、血液と脳の間を厳重に遮断する静的で硬直した防壁であると考えられてきました。しかし最新の知見は、BBBが神経活動の需要や睡眠・覚醒の履歴に極めて敏感に連動し、構造と機能をダイナミックに変化させる適応的なインターフェースであることを示しています。睡眠不足が続いたとき、脳の門番は何を求めてゲートを開き、なぜ最終的に破綻してしまうのでしょうか。本稿では、2026年のナラティブレビュー論文に基づき、分子生物学的視点からそのメカニズムを紐解きます。
血液脳関門の真の姿:複雑かつ不均一な神経血管ユニット
神経血管ユニット(neurovascular unit ;NVU)
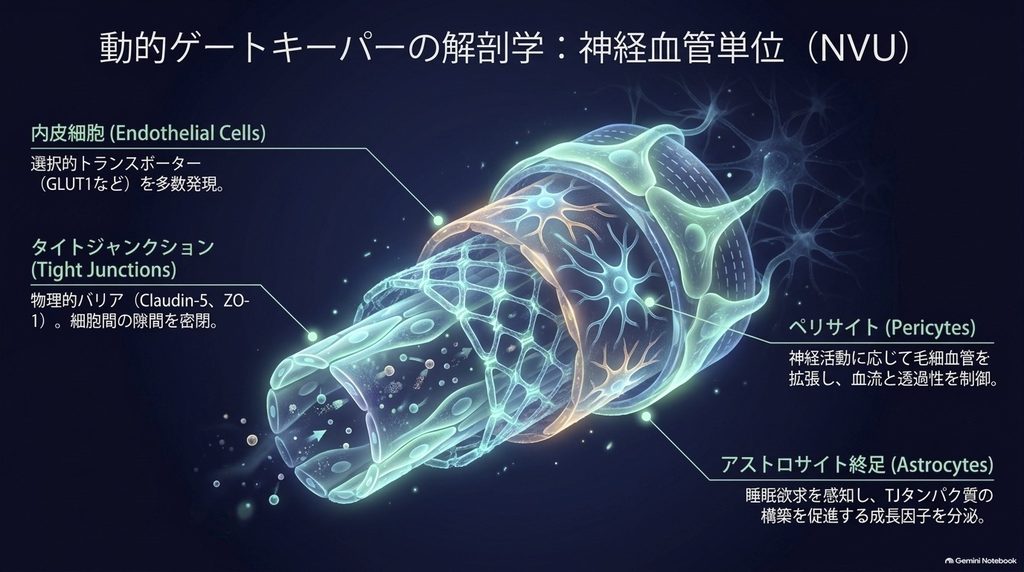
BBBは単なる内皮細胞の管ではありません。脳微小血管の内皮細胞(endothelial cells;ECs)を取り囲むようにペリサイトが接着し、さらにその外側をアストロサイトの終足が覆い、基底膜および血管腔側を覆う糖衣(glycocalyxグリコカリックス)とともに神経血管ユニット(neurovascular unit ;NVU)を形成しています。これにニューロンやミクログリアが加わり、局所の脳血流量、イオン恒常性、栄養供給、老廃物排除を協調して制御しています。
※ ペリサイト(pericyte、周皮細胞)とは、毛細血管や細小血管の壁面で内皮細胞を外側から包み込むように取り囲む血管壁細胞のこと。
※ アストロサイト(Astrocyte、星状膠細胞)とは、脳や脊髄などの中枢神経系に存在するグリア細胞(神経膠細胞)の一種。アストロサイトは星のようにたくさんの突起を伸ばしていますが、その先端が「終足 endfoot」です。
※グリコカリックス(Glycocalyx、糖衣)とは、あらゆる細胞の表面を覆っている、糖タンパク質や多糖類(糖鎖)でできた微細な網目状(ゲル状)のバリア層のこと。
タイトジャンクションタンパク質複合体による強固な封鎖、高度な恒常性
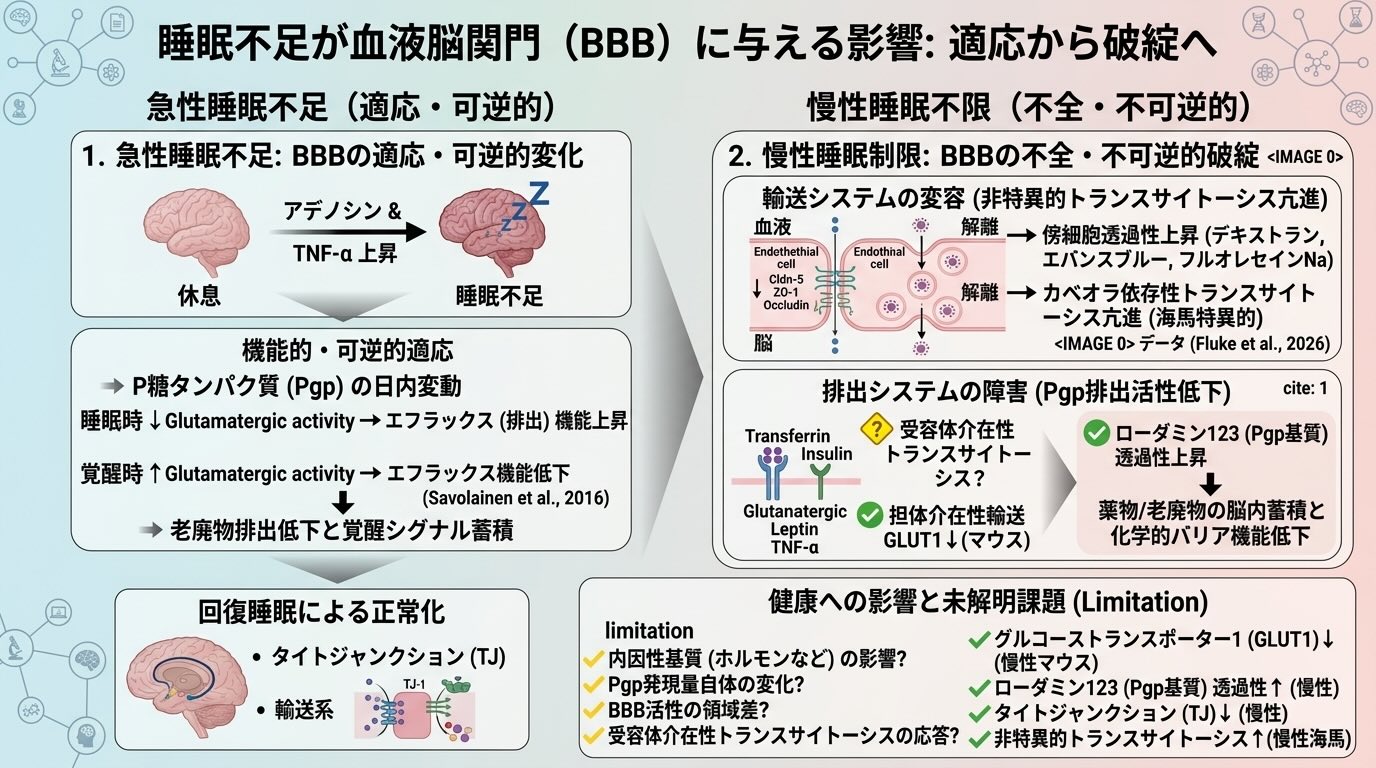
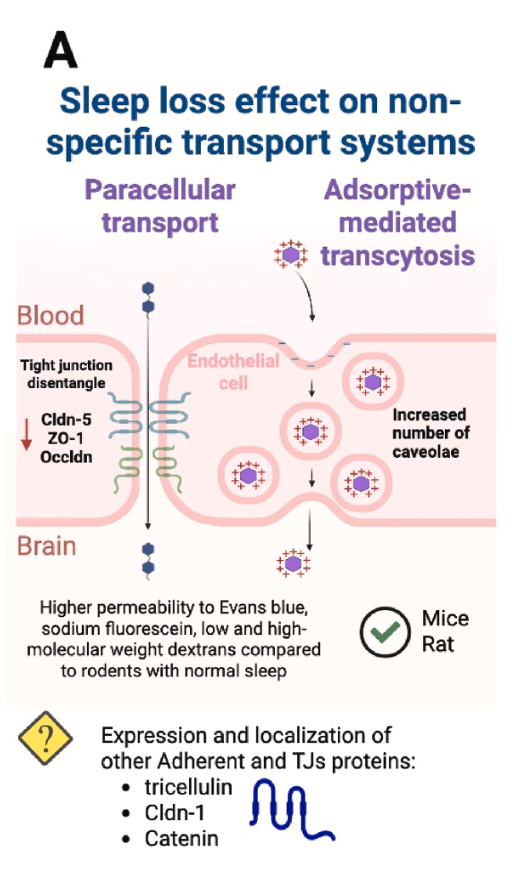
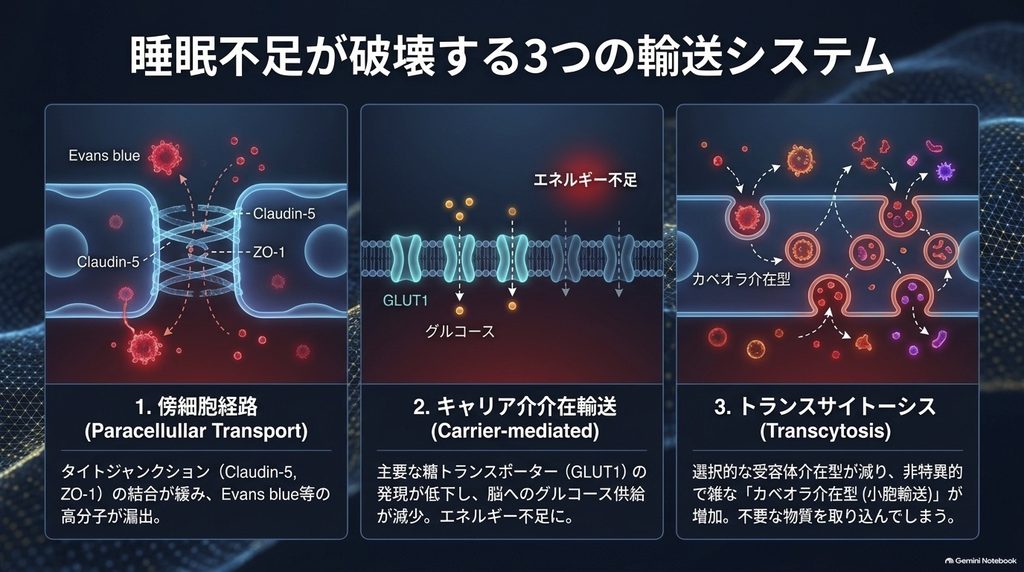
内皮細胞同士は、クローディン5(Claudin-5;Cldn-5)やオクルディン(Occludins;Ocldn)、そして細胞骨格と裏打ち結合するゾヌラ・オクルデンス1(Zonula occludens-1;ZO-1)などのタイトジャンクションタンパク質(Tight junction proteins;TJ)複合体によって極めて強固に封鎖されています。これにより、細胞間隙を物質が受動的に通過する傍細胞経路は厳密に制限されています。
さらに、物質の無秩序な通過を抑える低いトランスサイトーシス率、多様な選択的トランスポーター、免疫細胞の侵入を抑止する白血球接着分子の低発現などによって、中枢神経の高度な恒常性が維持されています。
BBBの脳領域特異性(不均一性)
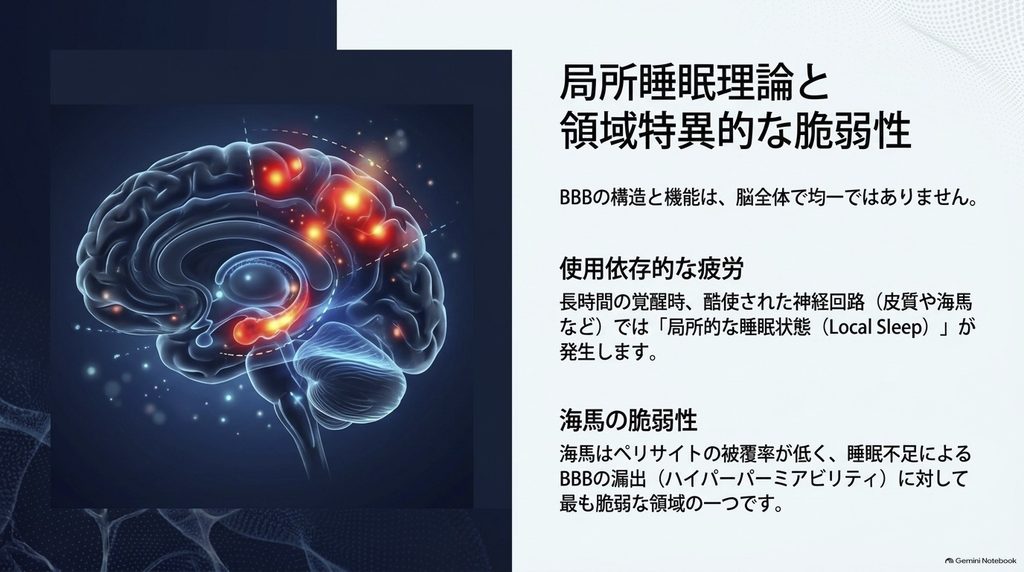
重要な点は、BBBの構造と機能が一様ではなく、明確な脳領域特異性(不均一性)を持っていることです。例えば海馬は、大脳皮質と比較してペリサイトの被覆率が低く、病態生理学的な負荷に対して脆弱であることが示されています。さらに興味深いことに、主要なタイトジャンクションタンパク質であるZO-1、Cldn-5、Ocldnの基底状態における発現量は海馬と皮質の間で大きな差が認められません。つまり、領域ごとの脆弱性の違いは単純なタイトジャンクションの量ではなく、血管密度や周囲のグリア細胞の被覆、受容体や輸送体の発現プロファイルといった複合的な要素に起因しているのです。
本研究の新規性:静的障壁から動的インターフェースへ
これまでの睡眠とBBBに関する研究は、エバンスブルーやフルオレセインナトリウム、デキストランといった外因性トレーサーの漏出を測定し、バリアが開いているか閉じているかというマクロな物理的破綻ばかりに焦点を当ててきました。また、日内変動(サーカディアンリズム)に伴う変化と、覚醒時間の延長(恒常性睡眠圧)に伴う直接的な影響が十分に区別されてこなかった側面もあります。
本研究の新規性は、BBBを単なる受動的な被害者ではなく、睡眠・覚醒サイクルおよび局所の神経活動の要求に呼応して輸送系や排出系を柔軟に作り変える動的なセンサー兼エフェクターとして捉え直した点にあります。具体的には、傍細胞透過性だけでなく、グルコーストランスポーター1(Glucose Transporter 1;GLUT1)をはじめとする担体介在性輸送、受容体介在性およびカベオラ依存性のトランスサイトーシス、そして異物や老廃物を能動的に汲み出すP糖タンパク質( P-glycoprotein;Pgp)といった多層的な輸送・排出システムの挙動を統合的にモデル化したことにあります。
睡眠と血液脳関門が織りなす双方向の対話
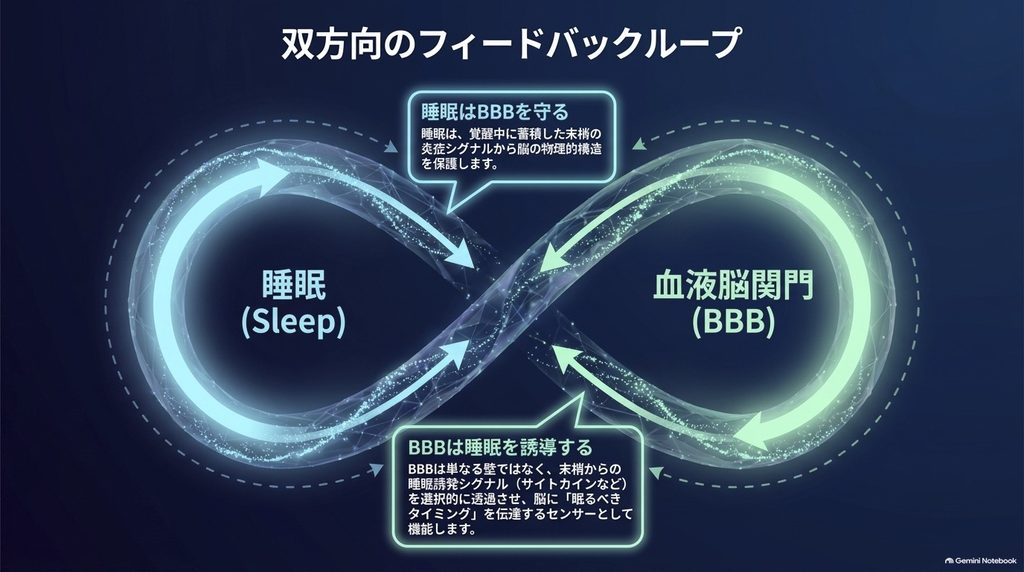
睡眠とBBBの関係は一方通行ではありません。両者は密接に情報交換を行っています。
末梢物質の睡眠行動修飾
末梢の腸内細菌叢に由来するペプチドグリカン成分(ムラミルジペプチドなど)やリポ多糖(Lipopolysaccharides;LPS)が末梢に存在すると、脳内の睡眠促進性サイトカインである腫瘍壊死因子α(TNF-α)やインターロイキン1β(IL-1β)の上昇と相まって、総睡眠時間の増加が引き起こされます。
また、インスリン、成長ホルモン放出ホルモン(growth hormone-releasing hormone)、ガラニン(galanin)、デルタ睡眠誘導ペプチド(delta sleep-promoting peptide)などの血中循環ペプチドは、BBBを通過して神経回路に直接作用し、睡眠行動を修飾します。
覚醒時間が長引くとこれらの分子の通過性が高まり、脳へ睡眠を促すシグナルが伝達されます。
睡眠や断眠が及ぼすNVUの変化
逆に、睡眠状態の変化はNVUの構成細胞を劇的に変化させます。アストロサイトは急性睡眠遮断から慢性睡眠制限に至る過程で迅速な形態的・機能的リモデリングを起こします。アストロサイトの終足はブドウ糖を取り込んで乳酸へ代謝し神経細胞に供給すると同時に、血管内皮のタイトジャンクション形成を促す成長因子を分泌しています。
一方、ペリサイトは神経活動に応じて毛細血管を拡張させて機能的充血を担いますが、マウスにおいて単回の急性断眠では脳脊髄液中のペリサイト損傷マーカーは上昇しないものの、反復的な慢性断眠では損傷マーカーが有意に上昇することが確認されています。
遺伝子発現レベルの変動も極めてダイナミックです。マウスを用いた5時間の急性睡眠遮断実験では、海馬、大脳皮質、視床下部において特異的な遺伝子発現の変動が確認されました。驚くべきことに、空間トランスクリプトーム解析により、海馬で発現低下した遺伝子の90%以上が大脳新皮質では逆に発現上昇していることが判明しています。このように、睡眠不足に対する分子応答は脳部位によって完全に異なっており、それが局所的なバリア機能の差異へと直結しています。
選択的輸送システムが物語る「飢餓と侵入」のパラドックス
睡眠不足に陥った脳血管では、極めて不条理な事態が生じています。バリアが緩んで異物の侵入を許す一方で、神経細胞が最も欲している栄養素の取り込みが遮断されてしまうという現象です。
GLUT1(Glucose Transporter 1)の発現低下
その主役がGLUT1です。内皮細胞におけるGLUT1は、エネルギー貯蔵を持たない神経細胞のためにブドウ糖を輸送する生命線です。ラットにおいて、GLUT1の密度はブドウ糖利用率を反映して膨大後部皮質で最も高く、海馬で中程度、小脳で最も低いという領域差が存在します。急性の睡眠遮断では視床下部や海馬、皮質のGLUT1発現に変化は見られませんが、慢性睡眠制限が加わると、脳微小血管におけるGLUT1の発現が有意に低下し、脳内へのブドウ糖取り込みが著しく減退します。
トランスサイトーシス(transcytosis)の老化
さらに、小胞を介した輸送であるトランスサイトーシスにも異常が生じます。トランスサイトーシス(transcytosis)とは、細胞が外側の物質を小胞(小さな袋)に包み込んで片側から取り込み、形を変えずに細胞内を通り抜けて、反対側へそのまま放出する仕組みのことです。
若齢マウスの海馬内皮細胞では、通常、トランスフェリン受容体1(Transferrin receptor 1;TfRc)やインスリン様増殖因子1受容体(Insulin-like growth factor 1 receptor;IGF-1R)、低密度リポタンパク質受容体関連タンパク質8(lipoprotein receptor-related protein 8;LRP8)などを介した選択的な受容体介在性トランスサイトーシスが優位に働いています。
しかし、慢性睡眠制限が加わると、海馬において内皮細胞の細胞老化マーカーが増加するとともに、フラスコ状の陥入構造であるカベオラを介した非特異的なトランスサイトーシスが顕著に増加します。これは加齢に伴うBBBの変化と酷似しており、睡眠不足が血管内皮の質的な老化を早めている可能性を示唆しています。
「必要なものだけを厳選して通す」というゲートキーパーとしての識別機能が失われ、不要なものや有害な血漿成分まで脳内へ素通りさせてしまう(バリア機能としての破綻)という現象が生じうるのです。
排出ポンプP糖タンパク質の日内変動と睡眠によるリセット
エフラックスシステム(Efflux systems)・P糖タンパク質(Pgp)
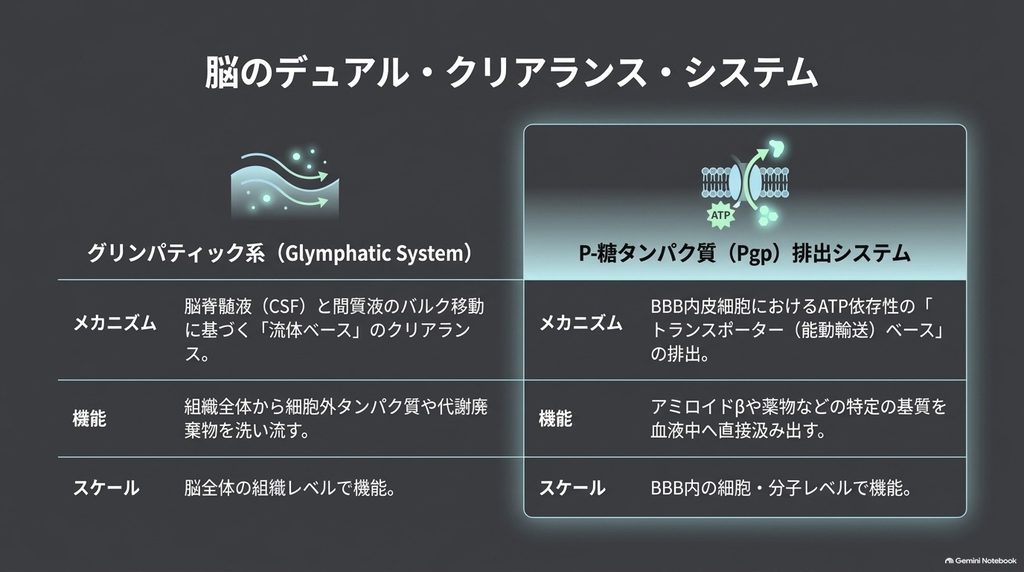
脳の老廃物除去システムといえば、アストロサイト終足のアクアポリン4(aquaporin-4;AQP4)水チャネルを介した間質液の流れであるグリンパティック系が注目されがちですが、細胞膜レベルで働くトランスポーター介在性のエフラックスシステム(Efflux systems)も重要です。
その中核を担うのが、ATP依存性の排出ポンプであるP糖タンパク質(Pgp = multidrug resistance protein 1;MDR1)です。Pgpは親油性の薬物や異物だけでなく、アミロイドβ(amyloid-β;Aβ)やステロイドホルモン(コルチゾール、アルドステロン、エストロゲン)を血管腔側へ直接汲み出す役割を担っています。
覚醒期にPgp活性が低下
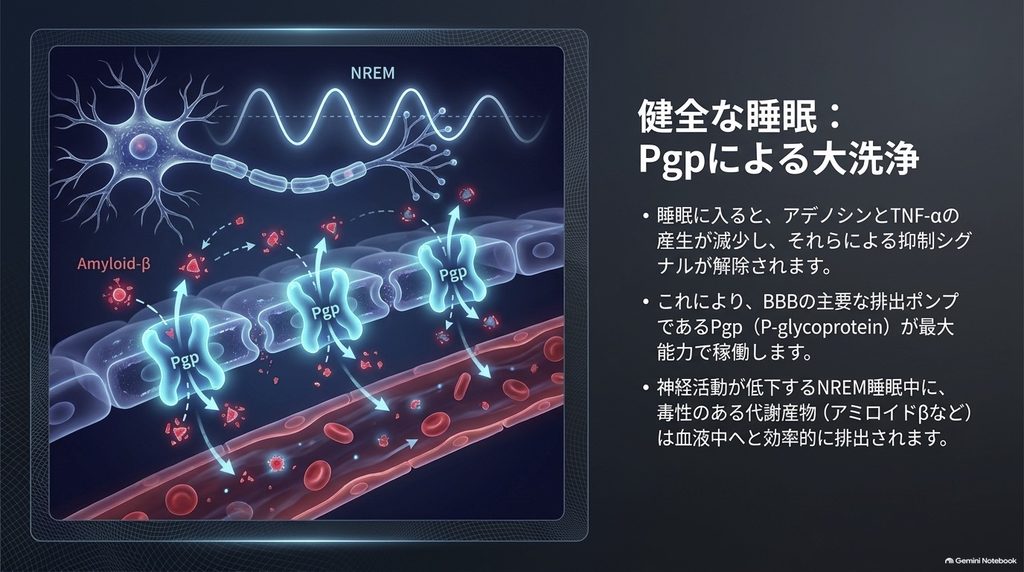
げっ歯類の研究において、Pgpの発現と排出機能は内皮細胞自体の時計遺伝子によって日内変動を示し、活動期(覚醒期)に比べて休息期(睡眠期)にその活性が有意に高まることが示されています。
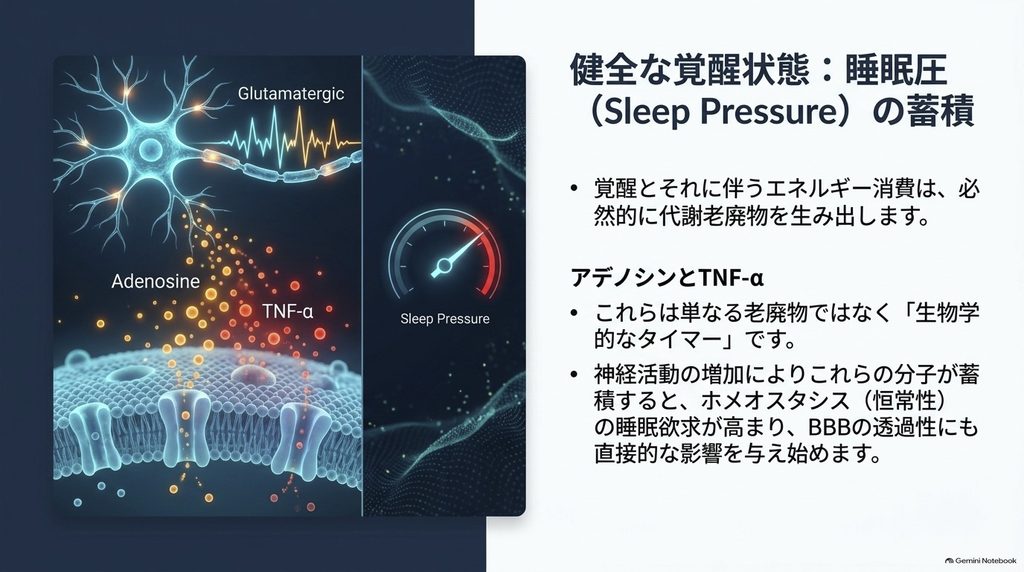
なぜ覚醒期にPgp活性が低下するのでしょうか。その鍵を握るのが神経活動です。グルタミン酸作動性神経の活動や感覚刺激が亢進すると、皮質のPgp発現と機能が抑制されます。覚醒中は神経細胞の発火が活発であり、これがPgpの転写を抑え込むシグナルとなります。そして睡眠、特にノンレム(non-rapid eye movement ;NREM)睡眠に入ると神経細胞の発火が全体として鎮静化し、Pgpに対する抑制が解除されて老廃物や代謝産物の効率的な汲み出しが行われます。
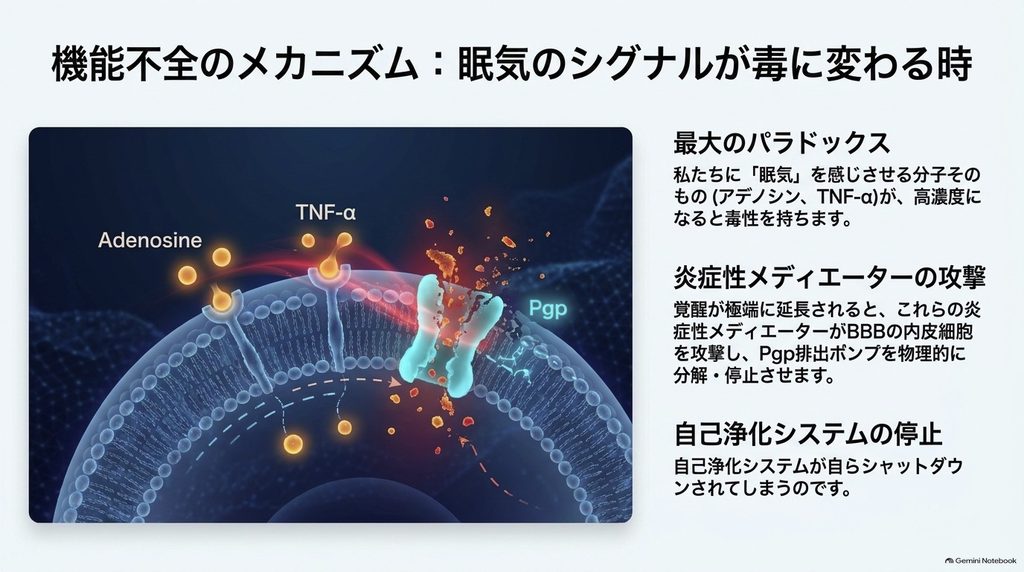
睡眠不足はこのバランスを根本から破壊します。覚醒が強制的に維持されると、アデノシン三リン酸(Adenosine triphosphate;ATP)の過剰な消費に伴って細胞外アデノシンが蓄積します。脳内のアデノシンおよびTNF-αの生理的濃度は、覚醒時と睡眠時で約10倍の開きがあり、入眠直前に最高値へ達します。生理的なアデノシン濃度は通常約10〜150 nMの範囲で推移しますが、アデノシン受容体A2A( Adenosine receptor A2A;ADORA2A)シグナルの活性化はマトリックスメタロプロテイナーゼを介してPgpの分解を促進することが培養内皮細胞およびマウス生体で確認されています。また、低濃度のTNF-αも内皮細胞のPgp発現を可逆的に低下させます。
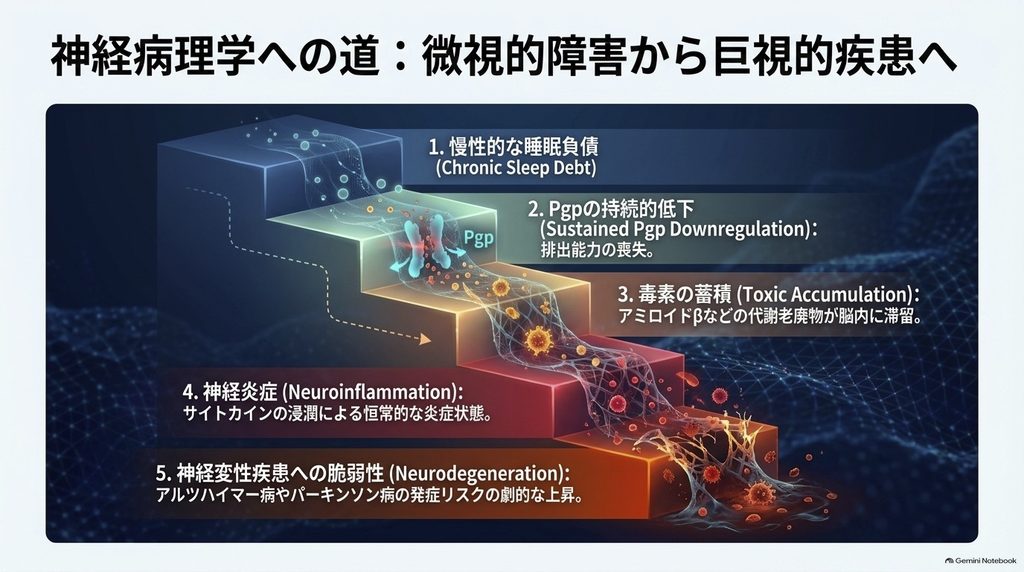
持続する過剰なグルタミン酸作動性神経活動、そして蓄積したアデノシンとTNF-αの協調作用により、Pgpの機能は強く抑制され続けます。その結果、本来なら睡眠中に血管外へ排出されるべき有害物質やAβが脳内に滞留し、逆に血中の親油性異物がフリーパスで脳内へ侵入しやすい危険な状態が作られるのです。
適応から破綻へ:諸刃の剣となる生体応答
急性睡眠不足;生き延びるための適応反応
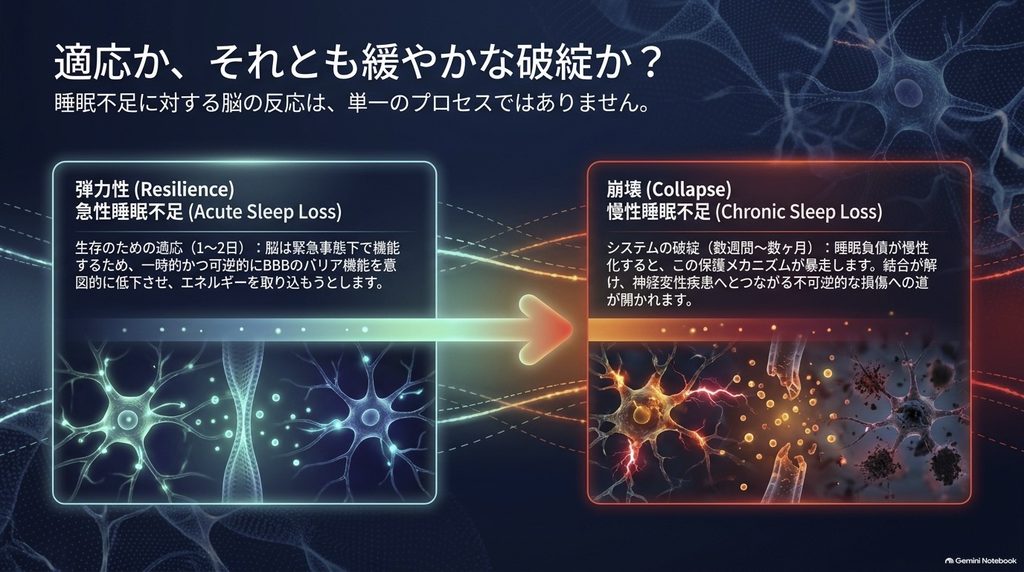
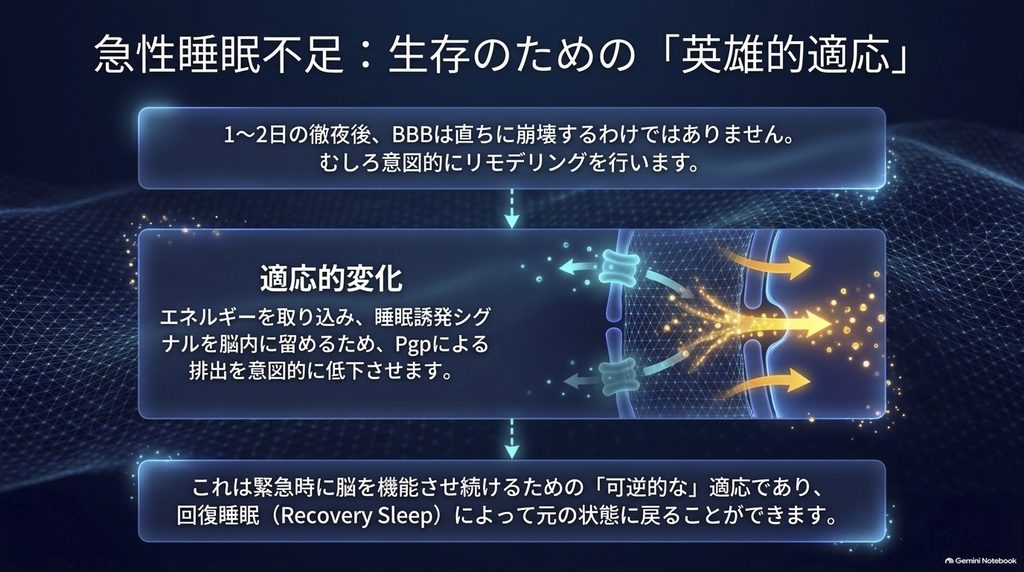
なぜ初期の段階でこのような変化が起きるのでしょうか。著者らは、急性睡眠不足におけるBBBの変化を、生体が過酷な要求を生き延びるための適応反応であると考察しています。
覚醒が長引いた初期段階において、アデノシンやTNF-αの上昇、そして血管透過性のわずかな亢進は、エネルギー要求を満たすための脳血流の増加、睡眠要求を中枢に警告するシグナルの伝達、さらにはTNF-αによる代償的なシナプスのダウンスケーリング(過剰興奮の抑制)を促すために機能します。この段階であれば、十分な回復睡眠をとることでタイトジャンクションの整序やトランスポーター機能は正常なベースラインへと戻ります。例えば、ラットを用いた10日間の睡眠制限実験(1日20時間の制限と4時間の休息)では、大脳皮質の透過性亢進はわずか120分の回復睡眠でベースラインまで回復します。
不可逆的な破綻(maladaptation)へ
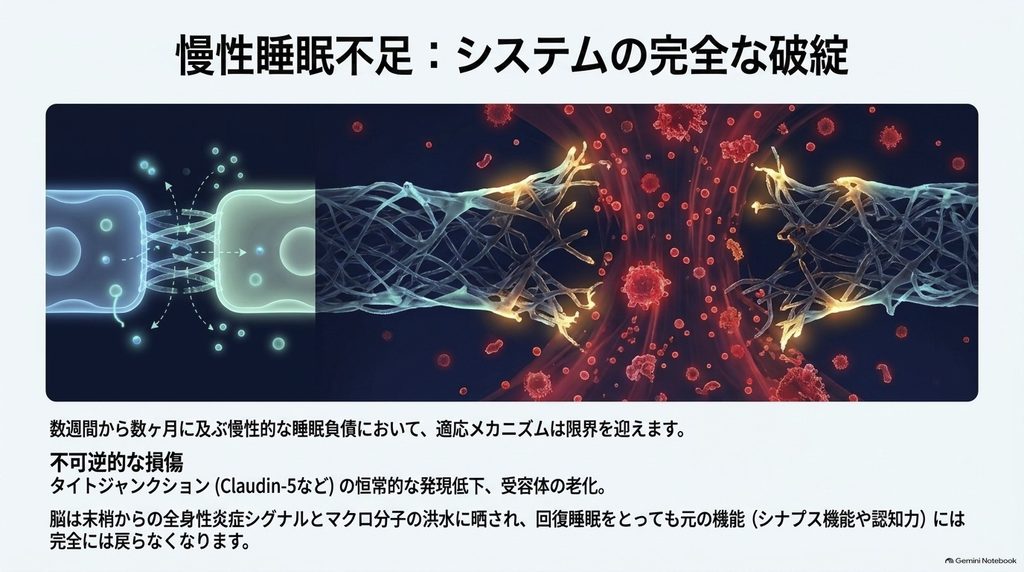
しかし、睡眠不足が慢性化、反復化すると、この適応は不可逆的な破綻(maladaptation)へと転じます。
前述の睡眠制限ラットでも、皮質は120分で回復したものの、海馬の透過性亢進とタイトジャンクション遺伝子の異常は回復睡眠後も遷延しました。
持続的なPgpの機能低下、タイトジャンクションの構造崩壊、カベオラ輸送による非特異的な分子の漏出、微小血管のGLUT1減少によるエネルギー枯渇が固定化し、慢性の神経炎症と神経変性の引き金が引かれます。
さらに恐ろしい事実は、ヒトの全断眠実験が示す主観と客観の解離です。健康成人を対象とした断眠研究において、回復睡眠をとることで本人が感じる眠気(主観的眠気)は速やかに解消します。しかし、客観的な注意力テストの成績低下、末梢血中の炎症マーカー(TNF-α、IL-6、CRP)の高値、そして脳内のアデノシン受容体動態の異常は、睡眠をとった後も数時間から数日間にわたって持続することが判明しています。「寝てすっきりした」という主観的な感覚の裏で、脳血管の生理学的障害は依然として修復しきれずに残存しているのです。
本研究の限界(Limitation)
本論文が提示する魅力的な仮説にも、いくつかの明確な学術的限界が存在します。
第1に、睡眠とBBBに関する既存データの多くが、高分子トレーサーの漏出を測る古典的実験に依存しており、トランスポーターやトランスサイトーシスの動態を直接捉えた研究が極めて乏しい点です。
第2に、アデノシンやサイトカインがBBBに与える影響を検証した先行研究の多くは、脳虚血や重症感染症といったアデノシン濃度がマイクロモル(μM)単位に達するような過酷な病態モデルに偏っており、睡眠不足時に生じる生理的変動幅(数十〜数百nM)で生体内において同一の現象が起きているかについては、いまだ間接的な推論の域を出ていません。
第3に、生体における生物学的性差の影響が十分に検証されていない点です。過去の研究の多くは雄性げっ歯類を用いて行われており、性ホルモンの影響を受ける神経血管生理の差異は未解明のまま残されています。
明日から実践できる脳関門防衛戦略
この論文が提示する科学的知見は、私たちの日常の行動選択に強い警告と実践的な示唆を与えてくれます。
週末の寝だめによる錯覚を警戒してください。1日や2日徹夜をした後、長めの睡眠をとって「眠気が取れたから大丈夫」と感じても、BBBのタイトジャンクション修復、GLUT1の発現回復、蓄積した炎症性メディエーターの除去には数日単位の時間を要します。慢性的な睡眠負債を抱えている状態では、脳は知らぬ間にエネルギー不足と異物侵入の危機に晒されています。平日の睡眠時間を削って週末に補うライフスタイル自体が、海馬などの脆弱な部位に不可逆的な負荷をかけ続けていることを認識する必要があります。
睡眠負債を抱えた状態での化学物質の摂取には特別な注意を払う必要があります。睡眠不足下では、排出ポンプであるPgpの機能が低下し、タイトジャンクションが緩んでいます。これは、通常であればBBBによって脳内への侵入が阻止されている薬剤や脂溶性の化学物質、微量な毒素が、予期せぬ濃度で脳実質に侵入し、中枢神経系へ過剰な生理活性や副作用を及ぼすリスクを意味します。疲労困憊した状態での安易な投薬や有害因子の曝露は、普段以上に脳へ直接的な打撃を与えます。
脳の清掃工場を正しく稼働させるために、覚醒中の過度なグルタミン酸作動性興奮を鎮め、確実なノンレム睡眠を確保することが何よりの防衛策です。就寝直前の強い光やスマートフォンの刺激を遮断し、規則正しい明暗サイクルを整えることは、内皮細胞自体の時計遺伝子を正常に同期させ、休息期のPgp排出機能を最大化するために直結した生理的アプローチとなります。
押さえておくべき最重要ポイント10選
難しい内容だったともいますので、最後に復習です。
- 血液脳関門は静的な障壁ではなく、神経活動や睡眠要求に連動して機能を作り変える動的インターフェースです。
- BBBの構造と脆弱性は脳部位ごとに異なり、特に海馬は皮質に比べてペリサイト被覆率が低く、睡眠制限のダメージを強く受けます。
- 睡眠とBBBは双方向に対話しており、末梢の炎症産物やペプチドが睡眠を誘発する一方、睡眠状態がバリアの構造と排出機能を左右します。
- 慢性睡眠制限はCldn-5やZO-1の構造的解離を招き、傍細胞経路を介した有害分子の漏出を促進します。
- 慢性的な睡眠不足は、海馬において受容体介在性輸送から非特異的なカベオラ依存性トランスサイトーシスへのシフトを促し、血管の老化を模倣します。
- 脳微小血管のGLUT1発現が低下することで、睡眠不足の脳では神経活動に必要なブドウ糖の取り込みが制限されます。
- 主要な排出ポンプであるPgpは睡眠期に機能が高まり、覚醒中の活発な神経発火によって機能が抑制される日内リズムを持ちます。
- 覚醒の蓄積に伴い増加するアデノシン(ADORA2A受容体経由)やTNF-αは、内皮細胞のPgp発現と排出能を低下させ、老廃物の蓄積を招きます。
- 急性期のBBB変化は生体恒常性を維持するための可逆的な適応ですが、睡眠不足が持続すると非可逆的な機能障害へと転じます。
- 全断眠後の短時間の睡眠によって主観的な眠気は回復しても、認知機能の低下や炎症マーカー、アデノシン動態の異常は長期間残存します。
参考文献
Fluke, S. K., Hurtado-Alvarado, G., Davis, C. J., Escobar, C., Guerrero-Vargas, N. N., García-Páez, L. E., Ruiz-Manzano, R., Contis-Montes de Oca, A., & Satterfield, B. C. (2026). The sleep-deprived blood-brain barrier: Does the Brain’s gatekeeper adapt or merely fail slowly? Neurobiology of Sleep and Circadian Rhythms, 21, 100151.