はじめに:私たちが信じてきた「安心の神経」の正体
ストレス社会を生きる私たちにとって、自律神経を整えるというテーマは極めて身近な関心事です。特に、トラウマケア、心理療法、ボディワーク、マインドフルネスなどの領域で絶大な支持を集めてきた枠組みが、スティーブン・ポージェス氏の提唱した「ポリヴェーガル理論(多迷走神経理論:polyvagal theory;PVT)」でした。
この理論は、「爬虫類由来の原始的な背側迷走神経(フリーズ・解離を担当)」「戦うか逃げるかの交感神経」、そして「哺乳類だけが進化の過程で獲得した、安心と社会交流を担う腹側迷走神経」という3段階の進化的な階層構造を提示しました。そして、呼吸に伴って脈拍が変動する現象である「呼吸性洞性不整脈(RSA)」を測れば、その人がどれくらい安心を感じ、他者と良好につながれているかを示す「腹側迷走神経トーン」が客観的に分かると説いてきました。
このわかりやすく魅力的な物語は、瞬く間に臨床現場や一般のヘルスケアへと広まりました。ご自身の心身の不調やトラウマ反応に対して「いま背側迷走神経が働いてフリーズしているのだ」と説明を受け、納得した経験をお持ちの方も少なくないはずです。
しかし、もしその理論の土台となっている解剖学、生理学、進化生物学の前提が、ことごとく事実と異なっていたとしたらどうでしょうか。
2026年、自律神経学、心臓生理学、比較進化生物学の第一線で活躍する世界的な専門家39名が結集し、臨床神経精神医学誌『Clinical Neuropsychiatry』に1編の記念碑的コメンタリーを発表しました。その結論は極めて痛烈です。「ポリヴェーガル理論は、既存の神経生理学的および進化的証拠に照らして完全に擁護不能(untenable)である」。これまで信じられてきた自律神経のストーリーがなぜ科学的に成り立たないのか、その核心を紐解いていきます。
研究デザインと本解説の新規性
本論文の研究デザインは、Stephen W. Porges氏が2025年に発表した包括的総説(Porges, 2025a)に対する、国際的な専門家39名による批判的吟味を伴う評価論文(エキスパート・コメンタリー)です。
既存の議論において、ポリヴェーガル理論に対する批判は個々の研究者から散発的になされてきました。しかし、これほど大規模に、迷走神経生理学、心肺制御、神経解剖学、動物行動学の世界的権威が一堂に会し、かつてPVT文献の中で「理論を支持する根拠」として名前を引用されてきた当事者たち自身が、自らの研究成果を正しく引用し直して理論の根本的な誤謬を網羅的に論破した点に、本研究の決定的な新規性があります。招待された40名のうち、理論を知らなかった1名を除く39名全員が共著者として名を連ね、満場一致で「PVTは破綻している」と宣言しました。
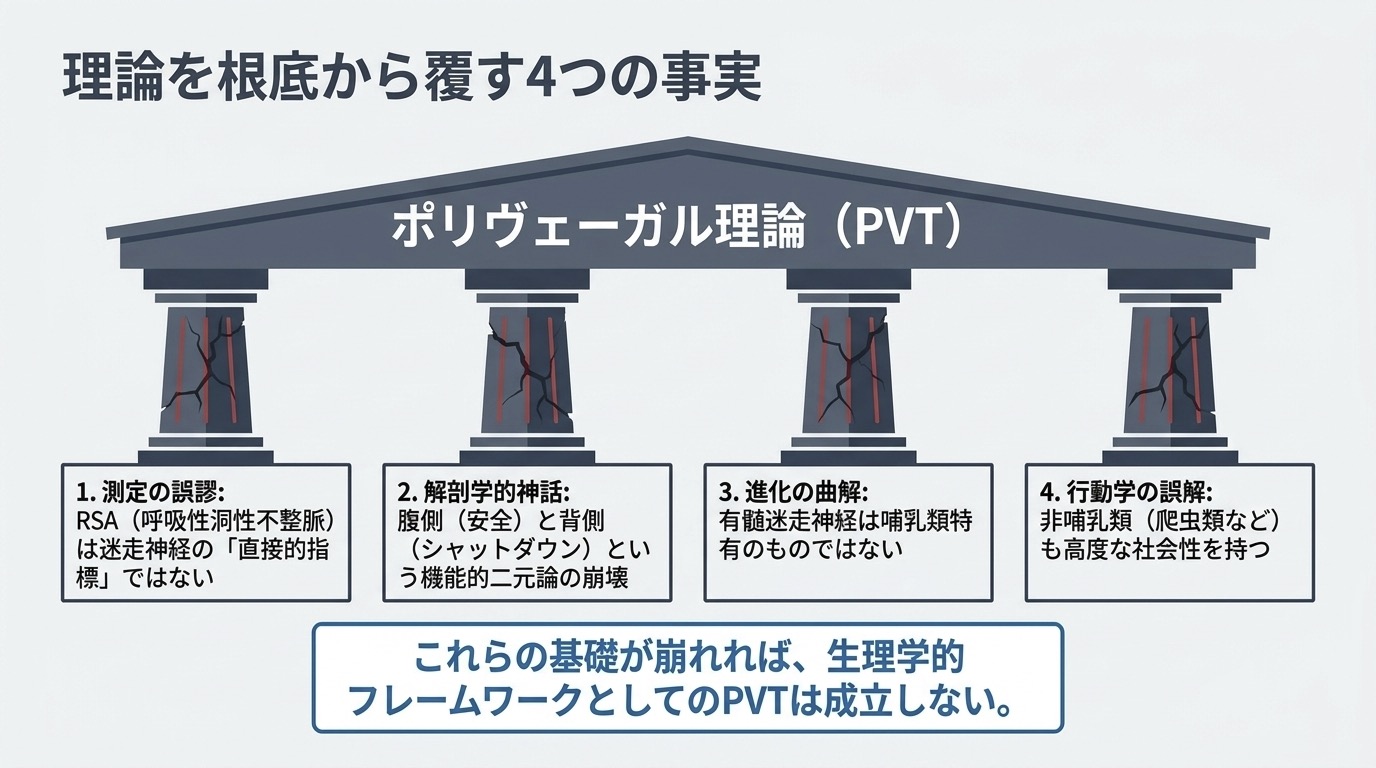
迷走神経の真実1:呼吸性洞性不整脈(RSA)は安心のメーターではない
PVTの最大の柱は、心拍変動解析で広く用いられるRSAが、脳幹の疑核(NA)から心臓へと向かう中枢性の迷走神経遠心性活動の純粋な直接指標であるという主張です。PVTでは、RSAが末梢の生理的メカニズムに左右されない中枢の指標であり、社会交流や情動回復力の指標になるとされてきました。
しかし、過去数十年にわたる心肺生理学の研究成果は、これと真っ向から対立します。
まず、RSAは本質的に末梢で生じる心拍の揺らぎの測定値に過ぎません。その本来の生理的意義は、呼吸運動と心血管系を協調させ、効率的なガス交換を維持することにあります。RSAが反映しているのは、呼吸周期に伴って生じる迷走神経活動の動的で位相的な変動(振幅)だけであり、平均心拍数を維持している持続的・緊張性の迷走神経活動(心臓迷走神経トーン)そのものではありません。
決定的な事実として、等しい心臓迷走神経トーンを持っていてもRSAの大きさが大きく異なることや、逆にRSAの大きさが同じであっても心臓迷走神経トーンが全く異なることが実証されています。個体間におけるRSAの違いは、個人の心臓迷走神経トーンの差を正確に反映しません。
さらに、RSAの振幅は、中枢の神経出力とは独立した多数の末梢的・非神経的要因によって激しく修飾されます。
- 呼吸数と一回換気量(深さ):呼吸のパターンが変わるだけで、中枢のトーンとは無関係にRSAの大きさは劇的に変動します。
- 機械的伸展:呼吸運動に伴う静脈還流量の変化によって、心臓の洞房結節が直接物理的に引き伸ばされることで生じる心拍変化。
- 圧受容器反射:呼吸による胸腔内圧の変動が血圧を揺らし、それを感知した動脈圧受容器を介して生じる反射。
- 動脈血中二酸化炭素分圧(高炭酸ガス血症):CO2の上昇が自律神経系に直接・間接の影響を与えます。
- 交感神経活動の関与:βアドレナリン作動性の交感神経活動がRSAの大きさに直接影響を及ぼすため、RSAは迷走神経単独の特異的指標ではありません。
- 加齢による血管の硬化や、脳幹における呼吸活動と心臓迷走神経発火の脱結合。
- 心臓局所の固有神経系:心臓の表面に広がる神経節(intracardiac neurons)において、迷走神経終末から放出されるアセチルコリンと、交感神経刺激等に伴って放出される種々の神経ペプチドが相互作用し、最終的な洞房結節への伝達をその場で調整しています。
このように、心臓迷走神経トーンとRSAの間には無数の修飾因子が介在しています。Porges氏が提唱した、RSAを心拍周期と呼吸周期の信号から補正計算したとする「重み付けコヒーレンス(weighted coherence)」や「迷走神経効率(vagal efficiency)」といった派生指標も、中枢の心肺発振器の効率を測るものとして生理学的な根拠は全く存在しません。Porges氏自身の1986年の実験データにおいてさえ、アトロピン等によるコリン作動性遮断によって迷走神経が遮断された際、重み付けコヒーレンスは一定を保つどころか直線的に増加しており、自身の仮説と矛盾する結果が示されています。
RSAが状況によって心臓迷走神経トーンと相関したりしなかったりする現象は、決して謎に満ちた「迷走神経のパラドックス」などではなく、RSAがそもそも心臓迷走神経トーンの不安定な近似値に過ぎないことから生じる当然の帰結なのです。
迷走神経の真実2:「背側迷走神経シャットダウン」という架空の恐怖反応
PVTが描くドラマチックなシナリオの一つに、人間が極限の恐怖や絶望的なトラウマに直面したとき、爬虫類的な原始的防御反応として「背側迷走神経複合体(DMV)」が作動し、無髄線維を介して心臓を急激に急停止寸前まで減速させ、血圧を落とし、失神や解離、凍結(フリーズ)をもたらすという「背側迷走神経シャットダウン」があります。
しかし、最新の神経解剖学および電気生理学の知見は、このストーリーを明確に否定しています。
哺乳類において、日常の細かな心拍調整から、急激で劇的な徐脈に至るまで、心臓を減速させる迷走神経出力の主役は、背側核ではなく、腹側に位置する疑核(NA)です。
ネコ、ラット、イヌ、ヒツジなどを用いた膨大な研究において、背側運動核(DMV)が心拍数に及ぼす影響は極めて限定的であることが確認されています。ラットを用いた近年の研究では、DMVのニューロンを光遺伝学の手法で強力に刺激しても、心拍数には有意な変化が生じませんでした(Kellett et al., 2024)。また別のマウスの研究において、オキシトシン受容体陽性のDMVニューロンを刺激して生じた心拍数低下は50 bpm程度であり、これは基礎心拍数のわずか10%以下の低下に過ぎませんでした(X. Wang et al., 2025)。
さらに、マウスのDMVを刺激して徐脈を誘発させた別の精密な実験(Strain et al., 2024)では、徐脈は見られたものの、PVTの予測とは正反対に、動物の不安様行動が減少するという結果が得られています。
また、解剖学的な分類においてもPVTは破綻しています。PVTは「DMVからは原始的で遅い無髄線維のみが伸びている」と主張しますが、ウサギやヒツジなどの哺乳類において、DMVから心臓へ伸びる有髄線維の存在が明確に同定されています。イヌの実験では、無髄線維を刺激しても心拍数にはほとんど影響がなく、心拍を大きく下げるのは有髄線維の刺激でした。
何より臨床的に重要なのは、PTSD患者などを対象とした近年の厳密な心理生理学的研究において、感情的凍結や解離エピソードの最中に、PVTが唱えるような「心拍数の急激な激減(大規模な徐脈)」など起きていないという事実です(Beutler et al., 2022; Roelofs & Dayan, 2022; Danbock et al., 2024; Beutler-Traktovenko et al., 2025)。測定される心拍数は、変化しないか、あるいは身体が動かなくなったことによる代謝需要の低下に見合った、ごくわずかな低下を示すに過ぎません。
神経解剖学的に「背側迷走神経複合体」とは、内側孤束核(NTS)、迷走神経背側運動核(DMV)、最後野から構成され、主に胃腸管の運動や消化機能を統御する機能単位です(Travagli & Anselmi, 2016)。これを恐怖による受動的防御行動や身体のシャットダウンと結びつける根拠は、現代の神経科学にはどこにもありません。
迷走神経の真実3:比較生理学と進化の歴史を書き換えていた誤謬
PVTは、進化のタイムラインについても独自の解釈を展開してきました。「有髄の心臓抑制性迷走神経線維は哺乳類特有のイノベーションであり、爬虫類や鳥類には存在しない」「爬虫類には中枢で協調した心肺発振器がなく、呼吸と心拍の連動が存在しない」「したがって爬虫類は防衛的で社会性を持たない」という論法です。
しかし、この進化史の記述は、比較生理学の歴史を完全に無視したものです。
有髄の心臓抑制性迷走神経線維は、哺乳類だけの専売特許ではありません。軟骨魚類のトラザメ(Scyliorhinus canicula)をはじめ、肺魚、両生類、爬虫類、鳥類に至るまで、研究されたすべての脊椎動物群において、伝導速度の速い有髄の迷走神経遠心性線維が心臓に分布していることが、約半世紀前からの研究の積み重ねによって完全に証明されています(Short et al., 1977; Taylor et al., 2014, 2022)。
トラザメの研究では、DMVに存在する心臓迷走神経節前ニューロン(CVPN)から伸びる有髄線維が、呼吸(エラ換気)活動と完璧に同期した心拍調節を行っていることが示されています。これは脊椎動物の中でも最も緊密な心肺同期現象の一つです。
呼吸に伴う心拍の変動は、魚類から鳥類、哺乳類に至るまで、すべての脊椎動物群に普遍的に存在します。水生から陸生へと進出し、肺呼吸へと移行する進化の過程で、中枢の抑制性神経回路の配置が整理され、哺乳類に見られるような吸気時の迷走神経抑制による心拍上昇(RSA)の形へと受け継がれてきたのです。それは呼吸ガス交換を最大化するための純粋な呼吸循環系の適応であり、哺乳類の愛着や社会行動のために新設された回路ではありません。
さらにPVTは、「個体発生は系統発生を反復する」というヘッケルが1866年に唱えた反復説を無批判に引用し、胎児の発生過程で心臓抑制ニューロンがDMVから疑核へと腹側に移動することが、哺乳類への進化的飛躍を再現していると主張しました。しかし、ヘッケルの反復説は、比較発生学の進展によって1世紀以上も前に科学的に完全に否定・破棄された学説です。否定された過去の仮説の上に現代の神経理論を構築することはできません。
動物行動学の真実:否定された爬虫類の「非社会性」
PVTは、爬虫類を「社会性を欠き、安全と危険の識別ができず、防衛的な反応しか示さない原始的な存在」と位置づけ、それと対比させる形で哺乳類の優位性を語ります。
しかし、現代の動物行動学において、この見解は完全に時代遅れです。
爬虫類は言葉やヒトのような豊かな表情こそ使いませんが、姿勢、ジェスチャー、音、化学受容刺激を用いて複雑な情動表出とコミュニケーションを行っています。野外および実験室での膨大な観察から、多くの爬虫類において以下のような高度な社会行動が確認されています。
- 長期にわたるつがいの絆と一夫一婦制
- 配偶者防衛や複雑な求愛ディスプレイ(求愛行動)
- 産卵後の長期的な保護、子どもの保護、さらには共同での子育てや授乳行動に類する養育
- 共同営巣、親和的な身体の接触や社会的接近
- 群れでの同調行動(魚類の群れ行動など)
- 食物の共有、他者の行動からの社会的学習、さらには互恵的な援助行動や協力して行う狩り
- 順位制、なわばり行動、集団での警戒行動、そして他者の存在によってストレス反応が緩和される「社会的ストレス緩衝(social-stress buffering)」
さらに、自律神経系や迷走神経の構造を一切持たないアリやハチなどの社会性昆虫が、極めて微小な脳でありながら高度な社会組織と利他行動を営んでいることを見ても、「腹側迷走神経の有髄化が社会性の必要条件である」というPVTの前提がいかに生物学的事実から乖離しているかが分かります。
論文の精査で見えてきた引用の破綻
なぜ、これほど多くの明らかな誤りが、さも確立された科学的事実であるかのように信じられてきたのでしょうか。本論文の著者らは、Porges氏の2025年の総説に掲載された引用文献を綿密に検証し、深刻な引用の不備を指摘しています。
Porges氏の論文が引いた47本の参考文献のうち、37本はPorges氏自身またはその共同研究者による心理学・精神生理学の領域の論文でした。そして、客観的な生理学的根拠として引用された残りの10本の論文のうち、実に半数において、著者名の間違い、掲載誌の間違い、あるいは論文そのものが存在しないという不備が見つかりました。
代表的な例として以下が挙げられます。
- 存在しない文献:中枢の心肺発振器の根拠として挙げられた「Richter & Spyer (1990)」という論文は実在せず、同タイトルの2001年の総説(Richter & Spyer, 2001)には進化や心肺協調の指標に関する記述はありません。実際のRichterらの論文(Richter et al., 1991)を読めば、彼らが主張していたのは哺乳類特有の機構ではなく、脊椎動物全体に共通する中枢性心肺ネットワークの存在でした。
- 研究内容の取り違え:爬虫類と哺乳類の自律神経の違いをゲノムレベルで証明したかのように引用された「Cao et al., 2019」や「Liu et al., 2024」は、著者名が完全に誤っているだけでなく(正しくはCoverdell et al., 2019およびHornung et al., 2024)、実際にはマウスとラットの脳幹ニューロンを対象とした単一細胞トランスクリプトーム解析であり、爬虫類など一切実験に含まれていませんでした。
- 批判相手の主張の歪曲:Grossman氏らが「RSAは呼吸の機械的アーティファクトであると主張している」と批判されていますが、Grossman氏らは一貫して心肺制御の中枢性を論じており、呼吸パラメータを統計的に制御すべきだと主張したのは、RSAを個体内での迷走神経トーンの変化の指標として用いる際の交絡因子を排除するためでした。
自説を補強するために、実在しない文献や、自説を支持していない文献、実験対象すら異なる文献を引用していた実態が明らかになったのです。
本論文の限界(Limitation)
本論文の限界として以下の点が挙げられます。第一に、本論文はPVTの生理学的・進化的前提が誤りであることを実証的に証明することに特化したコメンタリーであり、自律神経系と心理的プロセスの真の相互作用を説明するための包括的な代替モデルを詳細に提示するまでには至っていない点です。第二に、感情的凍結時の自律神経動態について、マウスやウサギなど一部の動物種ではDMV刺激による徐脈が観察されるなど、種差や実験条件による多様性が残されており、すべての脊椎動物の反応を一律の単一回路として単純化することはできないという限界があります。
私たちが明日からの実践にどう活かすべきか
この論文が伝えている最も大切なメッセージは、「心理療法の価値の否定」ではありません。
心理的安全性、他者との安心できるつながり(共同調整)、トラウマによる感情の麻痺やフリーズといった現象は、PVTが提唱される何十年も前から、愛着理論や人間性中心心理療法、トラウマ研究において臨床的に観察され、大切に扱われてきた知見です。マインドフルネスや深呼吸、身体への気づきが心を落ち着かせるという事実そのものが消え去るわけではありません。
問題なのは、それらの貴重な心理的体験を説明するために、科学的に間違った「解剖学のファンタジー」を被せてしまうことです。
明日からの臨床や生活において、私たちは以下の点を行動に移すことができます。
- 誤ったラベル貼りを手放す
「いま私の背側迷走神経が働いてフリーズしている」「爬虫類の脳が暴走している」といった、生理学的に誤った自己解釈や患者への説明をやめること。不正確な神話は、本人が自らの生きた身体感覚や情動と誠実に向き合うプロセスをかえって邪魔してしまいます。 - 心拍変動(HRV)の数値を過信・絶対視しない
スマートウォッチや簡易測定器で測るHRVやRSAの数値を、「自律神経の絶対的な健康度」や「安心のバロメーター」として一喜一憂しないこと。その数値は、昨日の睡眠、測定時の呼吸の深さ、直前に飲んだカフェイン、姿勢、交感神経の緊張度、心臓自体の受容体など、無数の要因が複雑に絡み合った結果です。 - より確かな神経科学へ目を向ける
自律神経系は、3段階の階段のような単純なスイッチではありません。脳幹の呼吸中枢、大脳辺縁系、前頭葉、圧受容器反射、そして心臓局所の神経ネットワークが常に双方向にフィードバックを送り合う、動的で洗練された恒常性維持システムです。心身のつながりを学ぶ際は、PVTの図式化された枠組みに頼るのではなく、確立された現代の自律神経生理学や神経科学の知見を土台にして、身体への理解を深めていくことが求められます。
真の心身の統合は、耳当たりの良い疑似科学のストーリーを脱ぎ捨て、複雑で精緻な私たちの身体の真の姿をありのままに知ることから始まります。
参考文献
Grossman, P., Ackland, G. L., Allen, A. M., Berntson, G. G., Booth, L. C., Burghardt, G. M., Buron, J., Dinets, V., Doody, J. S., Dutschmann, M., Farmer, D. G. S., Fisher, J. P., Gourine, A. V., Joyner, M. J., Karemaker, J. M., Khalsa, S. S., Lakatta, E. G., Leite, C. A. C., Macefield, V. G., Machado, B. H., McAllen, R. M., Menuet, C., Mendelowitz, D., Moraes, D. J. A., Neuhuber, W., Ottaviani, M. M., Paterson, D. J., Paton, J. F., Pellegrino, P. R., Ramchandra, R., Shanks, J., Schwaber, J. S., Shivkumar, K., Spyer, K. M., Taylor, E. W., Taylor, J. A., Wang, T., Yao, S. T., & Zucker, I. H. (2026). Why the polyvagal theory is untenable. An international expert evaluation of the polyvagal theory and commentary upon Porges, S.W. (2025). Polyvagal theory: current status, clinical applications, and future directions. Clin. Neuropsychiatry, 22(3), 169-184. Clinical Neuropsychiatry, 23(1), 100-112. https://doi.org/10.36131/cnfioritieditore20260110